CRISPR 基因编辑
- 核心组件
- gRNA + Cas 核酸酶
- 首次成功应用于真核细胞年份
- 2012年
- 主要发明人
- Emmanuelle Charpentier、Jennifer Doudna、张锋等
- 所获主要奖项
- 2020年诺贝尔化学奖
CRISPR 基因编辑技术脱胎于细菌和古菌的获得性免疫防御机制,该机制原本用于识别并切割入侵的噬菌体或外源质粒DNA11CRISPR-Cas Systems: Prokaryotes Upgrade to Adaptive Immunitycell.com前往参考资料 ↓在新标签页中打开
2012年,Emmanuelle Charpentier 与 Jennifer Doudna 团队在《Science》发表论文,证明CRISPR-Cas9系统可以在体外对任意指定的DNA片段进行精准切割,奠定了其作为通用基因编辑工具的基础22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
技术起源与基础生物学背景
原核生物CRISPR-Cas天然免疫系统的发现历程
1987年,日本学者石野良纯(Yoshizumi Ishino)团队在分析大肠杆菌的碱性磷酸酶基因周边序列时,首次发现了一段由长度为29个碱基的重复序列与32个碱基的非重复间隔序列交替排列组成的奇特基因组结构,但当时并未明确其生物学功能。55Clustered regularly interspaced short palindromic repeats (CRISPRs) in Escherichia colijournals.asm.org前往参考资料 ↓在新标签页中打开
2002年,西班牙微生物学家弗朗西斯科·莫伊卡(Francisco Mojica)正式将这类广泛存在于原核生物基因组中的重复序列命名为“成簇的规律间隔的短回文重复序列”,即CRISPR,同时首次提出该结构可能与原核生物的免疫防御机制相关。66CRISPR elements in Yersinia pestis acquire new repeats by preferential uptake of bacteriophage DNA, and provide additional tools for evolutionary studiesonlinelibrary.wiley.com前往参考资料 ↓在新标签页中打开
2005年,多个独立研究团队先后发现CRISPR序列中的间隔序列绝大多数来自于噬菌体、质粒等外源可移动遗传因子,为CRISPR参与原核生物获得性免疫的假说提供了关键的直接证据。77Identification of genes that are associated with DNA repeats in prokaryotesonlinelibrary.wiley.com前往参考资料 ↓在新标签页中打开
天然免疫系统的分子作用机制
CRISPR-Cas系统是绝大多数古菌与近半数细菌所携带的适应性天然免疫系统,其核心功能是识别并降解入侵的噬菌体、质粒等外源遗传物质,为原核生物提供特异性的获得性免疫保护。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
该天然免疫系统的作用过程可分为三个核心阶段:第一为适应阶段,宿主的Cas蛋白复合物识别入侵外源核酸的特定序列片段,将其整合到自身基因组的CRISPR阵列前导区下游,形成可遗传的新间隔序列;第二为表达阶段,CRISPR阵列被转录为长链前体CRISPR RNA(pre-crRNA),随后经过Cas核酸酶或宿主内源核糖核酸酶的加工,生成成熟的、带有单个间隔序列的crRNA;第三为干扰阶段,成熟crRNA引导Cas效应蛋白复合物靶向结合与间隔序列互补的外源核酸序列,通过核酸酶活性切割靶标分子,清除入侵的遗传物质。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
早期研究曾认为原核生物仅存在限制性修饰系统这类固有免疫机制,不存在类似真核生物的适应性免疫,CRISPR-Cas系统的分子机制解析彻底推翻了这一传统认知,拓展了学界对原核生物免疫体系的理解边界。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
对立说法部分后续研究指出,在CRISPR-Cas系统被正式解析前,已有零星研究观察到原核生物中存在可针对特定噬菌体产生特异性抗性的可遗传现象,仅未明确其分子机制,因此传统认知的推翻是逐步完成而非由CRISPR研究单独实现。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
从免疫防御工具到基因编辑工具的转化思路
1987年,日本学者石野良纯团队在分析大肠杆菌的碱性磷酸酶基因侧翼序列时,首次发现了成簇的、间隔短回文重复序列(CRISPR)的特殊结构,但当时并未明确其生物学功能。55Clustered regularly interspaced short palindromic repeats (CRISPRs) in Escherichia colijournals.asm.org前往参考资料 ↓在新标签页中打开
2005年,多个独立研究团队通过生物信息学分析发现,CRISPR的间隔序列片段与噬菌体、质粒等外源遗传物质的序列高度同源,首次提出CRISPR可能与原核生物的适应性免疫防御机制相关的猜想。1111CRISPR elements in Yersinia pestis acquire new repeats by preferential uptake of bacteriophage DNA, and provide additional tools for evolutionary studiesonlinelibrary.wiley.com前往参考资料 ↓在新标签页中打开
2007年,丹麦食品科技公司丹尼斯克(Danisco)的鲁道夫·巴朗格团队通过针对嗜热链球菌的实验证实,CRISPR系统可以通过整合外源噬菌体的DNA片段作为间隔序列,赋予细菌对应噬菌体的抗性,直接实证了CRISPR是原核生物的适应性免疫系统。88CRISPR provides acquired resistance against viruses in prokaryotesscience.org前往参考资料 ↓在新标签页中打开
2010-2011年间,研究人员明确了II-A型CRISPR-Cas9系统的核心工作组件:除CRISPR RNA(crRNA)之外,还需要反式激活CRISPR RNA(tracrRNA)参与Cas9核酸酶的激活和靶序列识别过程。1212The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNAnature.com前往参考资料 ↓在新标签页中打开
2012年,埃玛纽埃尔·沙尔庞捷与珍妮弗·杜德纳的合作团队在《科学》发表论文,证明可以将crRNA与tracrRNA人工融合为单链向导RNA(sgRNA),仅通过调整sgRNA的5'端序列即可引导Cas9核酸酶在任意指定的DNA位点完成精准双链切割,首次完成了将细菌免疫防御工具改造为可编程基因编辑工具的核心概念验证。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
部分早期研究观点认为CRISPR系统的切割特异性存在固有局限,难以应用于真核生物的复杂基因组编辑,后续多项独立实验在人类、小鼠等哺乳动物细胞中成功实现精准基因编辑后,该观点被普遍修正。1313CRISPR-Cas9: the birth of a revolutionary genome-editing toolnature.com前往参考资料 ↓在新标签页中打开
对立说法部分早期领域研究者曾提出,原核生物来源的CRISPR系统在真核细胞中可能面临核定位效率、染色质开放度适配等多重障碍,无法高效完成基因组靶向操作。1313CRISPR-Cas9: the birth of a revolutionary genome-editing toolnature.com前往参考资料 ↓在新标签页中打开
核心技术原理
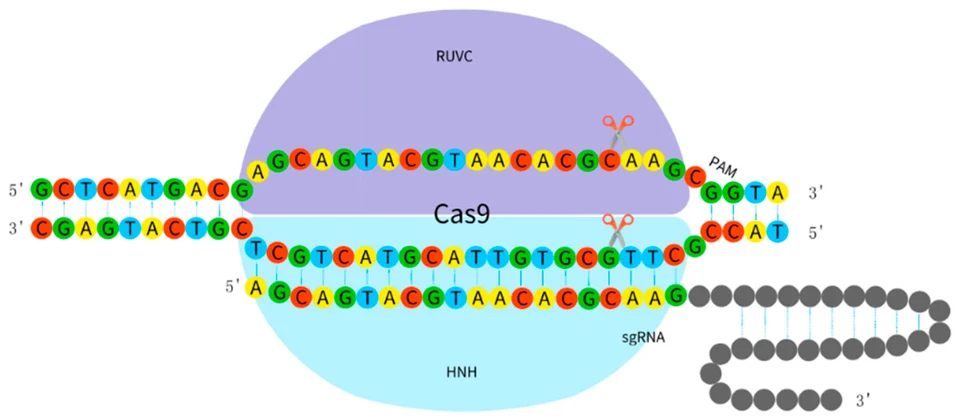
向导RNA(gRNA)的靶向识别机制
向导RNA(gRNA)的天然原型是CRISPR系统中由CRISPR RNA(crRNA)和反式激活CRISPR RNA(tracrRNA)通过碱基互补配对形成的二元RNA复合体,人工改造的单向导RNA(sgRNA)将二者的核心功能域融合为一条单链RNA,大幅简化了实验操作流程。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
gRNA的5'端前20个核苷酸构成的靶向识别区,负责通过沃森-克里克碱基互补配对原则,结合靶标DNA上的同源序列,该区域的序列特异性是CRISPR系统实现定点靶向的核心基础。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
靶标DNA上紧邻gRNA互补序列3'端的PAM(原间隔邻近基序)序列是Cas蛋白识别结合的必需条件,以应用最广泛的酿脓链球菌Cas9(SpCas9)为例,其识别的经典PAM序列为5'-NGG-3',不存在该PAM序列的基因组位点无法被SpCas9系统有效靶向。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
gRNA与靶DNA的结合过程遵循“种子序列优先识别”机制:gRNA 3'端靠近PAM的8-12个核苷酸区域被称为种子序列,该区域的碱基错配会几乎完全阻断Cas蛋白的后续切割活性,而远离PAM的5'端区域的单碱基错配往往仍能支持Cas蛋白结合甚至切割,这也是脱靶效应产生的核心机制之一。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
对立说法部分后续高分辨率结构研究与高通量错配扫描实验显示,种子序列的边界范围并非固定的8-12nt,会随gRNA整体GC含量、靶位点染色质开放状态发生动态偏移,部分位点中5'端的错配也可完全阻断靶向结合。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
Cas核酸酶的DNA切割原理
Cas9 核酸酶属于II型CRISPR系统的效应蛋白,天然状态下需要与crRNA和tracrRNA形成二元RNA引导的核糖核蛋白复合物后才具备DNA切割活性,其蛋白结构包含两个独立的核酸酶结构域:HNH结构域负责切割与引导RNA互补的DNA链,RuvC结构域负责切割非互补的DNA链。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
Cas核酸酶完成精准DNA切割的必要前提是靶DNA序列下游存在PAM(原间隔序列邻近基序)短序列,以最常用的酿脓链球菌来源的SpCas9为例,其识别的PAM序列为5'-NGG-3',只有靶位点紧邻该序列时Cas9才能完成后续的DNA解旋与结合过程。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
当Cas9复合物结合到匹配的靶序列后,HNH结构域会在PAM序列上游约3个碱基的位置切割互补链,RuvC结构域则在对应位置切割非互补链,最终在靶DNA上产生平末端的双链断裂(DSB)。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
部分研究团队提出Cas9的RuvC结构域还具备非特异性的单链DNA切割活性,在特定条件下可对游离的单链DNA进行非靶向切割,该结论尚未得到全研究领域的一致验证。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
对立说法另有独立实验结果显示,在生理反应条件下Cas9的RuvC结构域仅对与引导RNA配对的靶DNA链发挥定向切割作用,未观测到显著的非特异性单链切割活性。1010The new frontier of genome engineering with CRISPR-Cas9science.org前往参考资料 ↓在新标签页中打开
细胞内的DNA损伤修复通路:NHEJ与HDR
CRISPR-Cas系统在真核细胞基因组特定位置诱导产生DNA双链断裂(DSB)后,细胞自身的内源性DNA损伤修复通路会启动修复过程,这是CRISPR实现不同基因编辑效果的核心分子基础。1616The DNA repair pathway choices in CRISPR-Cas9-mediated genome editingsciencedirect.com前往参考资料 ↓在新标签页中打开
非同源末端连接(Non-Homologous End Joining, NHEJ)是真核细胞中占主导地位的DSB修复通路,可在无同源修复模板的情况下直接将断裂的DNA两端连接起来,该过程常伴随碱基的随机插入或缺失(indel),最终导致靶位点处的基因发生移码突变而实现基因敲除效果。1616The DNA repair pathway choices in CRISPR-Cas9-mediated genome editingsciencedirect.com前往参考资料 ↓在新标签页中打开
同源定向修复(Homology-Directed Repair, HDR)是仅在细胞周期的S/G2期活跃的高保真DSB修复通路,当体系中存在与断裂位点侧翼序列同源的外源DNA模板时,细胞可利用该模板完成断裂位点的精准序列替换或插入,实现CRISPR介导的精准基因敲入或位点特异性碱基修正。1616The DNA repair pathway choices in CRISPR-Cas9-mediated genome editingsciencedirect.com前往参考资料 ↓在新标签页中打开
目前学界普遍认为哺乳动物细胞中NHEJ的修复效率远高于HDR,常规实验条件下CRISPR诱导的DSB通过HDR完成精准修复的比例通常不足10%,该特性是限制CRISPR精准编辑临床转化效率的核心瓶颈之一。1616The DNA repair pathway choices in CRISPR-Cas9-mediated genome editingsciencedirect.com前往参考资料 ↓在新标签页中打开
对立说法部分最新研究通过化学小分子调控细胞周期、优化同源模板递送形式等手段,可将部分人类原代细胞中的HDR效率提升至30%以上,传统低效率结论已不适用于所有实验场景。1616The DNA repair pathway choices in CRISPR-Cas9-mediated genome editingsciencedirect.com前往参考资料 ↓在新标签页中打开
主流技术变体演进
经典CRISPR-Cas9系统
经典CRISPR-Cas9系统是首个被成功改造并应用于真核细胞基因组编辑的II-A型CRISPR系统,其天然来源为酿脓链球菌(Streptococcus pyogenes)的获得性免疫系统,该系统通过人工简化为仅需单条向导RNA(gRNA)与Cas9核酸酶两个核心组分即可完成靶向DNA切割的编辑工具。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
经典CRISPR-Cas9系统的靶向识别依赖基因组靶序列3'端的NGG基序,即原间隔邻近基序(PAM),该PAM序列的存在是Cas9核酸酶完成DNA双链切割的必要前提,这一特性也直接限定了经典SpCas9在基因组上的可编辑位点密度。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
经典CRISPR-Cas9系统介导的DNA切割会产生平末端的双链断裂(DSB),该断裂在真核细胞内主要通过非同源末端连接(NHEJ)或同源定向修复(HDR)两条内源性通路完成修复,其中NHEJ通路通常会引入随机的小片段插入或缺失,实现基因敲除效果,而HDR通路可在提供外源同源模板的情况下实现精准的位点定向突变或序列插入。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
部分早期研究指出经典CRISPR-Cas9系统的脱靶风险远高于锌指核酸酶(ZFN)与转录激活子样效应物核酸酶(TALEN)系统,而后续更多独立研究显示在合理优化gRNA设计规则的前提下,经典CRISPR-Cas9的脱靶水平可被控制到与前两代人工核酸酶相当甚至更低的区间,目前学界对经典Cas9天然脱靶倾向的高低仍存在未完全统一的结论。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
对立说法部分研究团队的早期测序数据显示未经过优化的经典CRISPR-Cas9系统在人类细胞中可检测到大量非预期的基因组位点切割,其脱靶事件数量显著高于同等靶向条件下的TALEN系统。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
Cas12、Cas13等其他Cas家族变体
Cas12a(旧称Cpf1)是2015年由张锋团队首次在弗朗西斯氏菌(Francisella novicida)等物种中发现的V-A型CRISPR相关核酸酶,与经典Cas9同属Class 2类CRISPR系统,但具有不同的结构与作用特性。1717Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-Cas systemcell.com前往参考资料 ↓在新标签页中打开
与Cas9切割后产生平末端不同,Cas12a靶向识别PAM序列(通常为TTTV)后,切割靶DNA会产生4-5个核苷酸长度的5'突出粘性末端,该特性更利于定向DNA片段的无缝插入连接,在精准基因敲入场景下具备独特优势。1717Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-Cas systemcell.com前往参考资料 ↓在新标签页中打开
Cas12a仅需要单一的crRNA即可完成靶向识别与切割,无需Cas9系统所需的tracrRNA组分,其crRNA设计长度更短,同时Cas12a具备自加工前体crRNA的能力,可在同一转录本上串联排布多个crRNA实现多基因位点同步编辑,简化了多靶点编辑的载体构建流程。1717Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-Cas systemcell.com前往参考资料 ↓在新标签页中打开
碱基编辑(Base Editing)技术
碱基编辑(Base Editing)技术由哈佛大学博德研究所的刘如谦(David R. Liu)团队于2016年首次正式发表,该技术在不诱导双链DNA断裂(DSB)的前提下,将CRISPR系统的Cas9蛋白改造为失去核酸内切酶活性的dCas9,再与胞嘧啶脱氨酶结构域融合,实现靶向的C→T单碱基精准转换,突破了传统CRISPR依赖同源定向修复(HDR)进行单碱基编辑效率低、易引入随机插入缺失的局限。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
初代胞嘧啶碱基编辑器CBE(Cytosine Base Editor)的原型为BE3,其编辑窗口通常覆盖sgRNA序列上的第4至第8位碱基(从PAM远端端开始计数),在哺乳动物细胞中实现C→T转换的效率普遍可达15%-75%,远高于同期传统CRISPR介导的HDR单碱基编辑效率。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
在初代CBE发布后不到一年,刘如谦团队又开发出腺嘌呤碱基编辑器ABE(Adenine Base Editor),通过定向进化改造出可作用于DNA的腺嘌呤脱氨酶,实现了无需DNA双链断裂的A→G精准单碱基转换,覆盖了人类已知致病变异中约半数的单核苷酸多态性突变类型的修正需求。1919Adenine base editors catalyze A-to-G changes in genomic DNAnature.com前往参考资料 ↓在新标签页中打开
早期版本的碱基编辑器存在一定的全基因组范围非靶向脱靶编辑风险,部分研究指出初代CBE会在基因组中大量非预期位点产生胞嘧啶转换突变,其脱靶事件数量显著高于同期优化后的SpCas9核酸酶系统,该结论在不同实验体系中存在观测差异。2020Cytosine base editor generates substantial off-target single-nucleotide variants in mouse embryosscience.org前往参考资料 ↓在新标签页中打开
对立说法部分独立研究团队通过全基因组测序验证发现,在严格控制递送剂量的条件下,优化后的CBE变体的非靶向单碱基突变频率处于背景突变噪声水平,并不存在初代研究中观测到的高脱靶现象。27
先导编辑(Prime Editing)技术
先导编辑(Prime Editing)是由哈佛大学刘如谦团队于2019年首次正式发表的CRISPR衍生精准基因编辑技术,核心设计思路是摆脱传统同源定向修复(HDR)的依赖,通过融合逆转录酶功能的工程化Cas9切口酶与专门设计的先导编辑向导RNA(pegRNA)实现对目标基因组位点的精准改写。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
先导编辑的核心功能组件包含三个核心部分:一是经过改造、仅切割DNA单链的Cas9切口酶(通常为H840A突变体),二是与该切口酶融合表达的莫洛尼鼠白血病病毒逆转录酶(M-MLV RT)工程化变体,三是同时携带靶位点识别序列、引物结合位点(PBS)以及包含预期编辑序列的逆转录模板的pegRNA分子。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
初代先导编辑系统(PE1)的基础编辑效率在人类多种细胞系中处于较低水平,后续通过优化逆转录酶的连接方式与蛋白序列得到的PE2系统,将精准编辑的整体效率相比PE1提升了数倍,大幅拓展了技术的实用场景。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
在PE2的基础上,研究团队进一步引入第二条可靶向非编辑链、引导其被Cas9切口酶切割的普通sgRNA,开发出PE3系统,通过诱导细胞对非编辑链的错配修复过程进一步提升了最终获得纯合精准编辑结果的概率,部分位点的编辑效率相比PE2实现了进一步提升。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
先导编辑技术理论上可实现的精准基因修饰覆盖范围远超传统碱基编辑器,既可以完成所有12种类型的单碱基替换,也能精准插入最长可达数十个碱基的外源序列、删除指定长度的内源基因组片段,还可同步在同一位点完成多类组合式的序列改写。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
先导编辑问世初期的多项对比研究显示,该技术在多数测试位点的脱靶事件发生率显著低于依赖双链断裂的传统CRISPR-Cas9编辑系统,也低于部分高活性的碱基编辑器变体,大幅降低了非预期基因组重排的发生概率。2121Search-and-replace genome editing without double-strand breaks or donor DNAnature.com前往参考资料 ↓在新标签页中打开
对立说法后续部分独立研究团队的实验结果显示,在特定细胞类型与特定pegRNA设计条件下,先导编辑系统仍可检测到不可忽视的非预期脱靶编辑事件,部分位点的脱靶效率甚至接近传统CRISPR编辑系统的水平,其安全性优势并非在所有场景下都能稳定体现。30
CRISPRi/CRISPRa 基因表达调控系统
CRISPRi(CRISPR干扰)与CRISPRa(CRISPR激活)系统的核心构建基础是将天然Cas9蛋白的核酸酶结构域引入双点突变,生成失去DNA切割活性的dCas9(dead Cas9)蛋白,该蛋白仍可在sgRNA引导下精准靶向特定基因组位点,仅保留结合DNA的能力。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
CRISPRi系统的初代设计无需额外融合功能结构域,仅依靠dCas9结合到靶基因的启动子区域或转录起始位点下游的编码区,即可通过物理空间位阻效应阻挡RNA聚合酶的招募或转录延伸过程,实现靶基因的可逆、特异性转录抑制。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
后续优化的CRISPRi系统将dCas9与KRAB(Krüppel相关盒)转录抑制结构域融合,大幅提升了转录抑制的效率,相比初代仅靠空间位阻的版本,对哺乳动物细胞内靶基因的沉默效率可提升数倍至数十倍,同时降低了非特异性干扰的概率。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
初代CRISPRa系统采用直接将dCas9与单个转录激活结构域(如VP64)融合的设计,但该方案对多数内源基因的激活幅度有限,难以实现靶基因的高水平过表达。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
为提升激活效率,后续研究开发出SunTag、SAM(协同激活介质)等新一代CRISPRa架构:其中SAM系统通过在sgRNA骨架上添加MS2 RNA适配体序列,招募多个携带VP64、p65、HSF1激活结构域的融合蛋白,可在单个靶位点上组装多组分激活复合物,实现对内源基因的强转录激活。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
部分研究指出CRISPRi/CRISPRa系统在靶向密集染色质区域时的结合效率会出现明显下降,其调控效果受靶位点附近的表观修饰状态影响较大,不同基因位点的调控异质性较高。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
对立说法另有独立研究团队通过优化sgRNA的靶向位置筛选规则,可在多数染色质状态的位点上获得稳定的CRISPRi/CRISPRa调控效果,大幅降低了位点异质性带来的影响。2222Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediatornature.com前往参考资料 ↓在新标签页中打开
实验室常规操作流程
靶向位点设计与gRNA构建
靶向位点设计的第一步是明确目标编辑类型,包括基因敲除、碱基替换、片段插入或长片段删除等,不同编辑类型对gRNA的位置、PAM序列选择的要求存在显著差异,常规需优先选择位于目标功能结构域编码区、且PAM序列为5'-NGG-3'的SpCas9识别位点。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
gRNA设计阶段必须通过全基因组序列比对完成潜在脱靶位点的预测,主流工具会同时统计错配碱基容忍度、染色质开放区域覆盖度等参数,优先选择特异性评分排名靠前、GC含量在40%-60%区间的候选位点,以平衡编辑效率与脱靶风险。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
针对基因敲除场景,业内存在两种主流的gRNA设计策略:一种是选择外显子起始区域的单条gRNA诱导移码突变,另一种是选择分别位于目标外显子上下游的两条gRNA介导整段外显子的完全删除,部分研究认为双gRNA删除策略的移码成功率更高,也有研究指出单gRNA策略操作更简便且足以满足多数常规实验需求。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
对立说法双gRNA介导的片段删除策略可完全避免部分移码后残留的部分功能蛋白表达,在需要完全敲除基因功能的场景下可靠性显著优于单条gRNA诱导的随机插入缺失突变。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
核糖核蛋白(RNP)或表达载体递送
CRISPR 实验室操作中核糖核蛋白(RNP)递送的常规流程,首先是在体外将纯化的Cas核酸酶蛋白与化学合成的sgRNA按预设摩尔比(通常为1:1.2至1:2)混合,在室温或37℃条件下孵育10至30分钟完成复合物组装,该步骤可避免质粒载体转录翻译过程带来的延迟与额外免疫刺激风险。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
针对不同细胞类型,RNP递送可选择对应的物理或化学介导方式:对悬浮细胞常用电穿孔法,对贴壁培养的哺乳动物细胞可采用脂质体转染试剂介导的递送,对原代细胞或难转染细胞也可结合核转仪实现更高的入核效率,该类递送方式的编辑起效时间通常在递送后24至48小时即可检测到。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
CRISPR表达载体递送的常规操作,首先是将编码Cas核酸酶的序列与sgRNA表达框组装至质粒、慢病毒载体或腺相关病毒(AAV)载体骨架中,经测序验证序列完全正确后,通过质粒大提获取高纯度无内毒素质粒,再根据实验体系选择转染或病毒包装后感染的方式导入靶细胞。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
当前研究界对RNP递送与表达载体递送的优劣判定存在争议:部分研究团队认为RNP递送的脱靶效应显著低于表达载体递送,因为RNP在细胞内的留存时间仅为数小时至数天,不会出现Cas蛋白持续过表达的情况。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
对立说法另一部分研究团队指出,在需要实现长期稳定编辑、或针对体内难以直接递送大分子RNP的组织场景下,表达载体递送尤其是整合型病毒载体的递送效率与编辑持续性更具优势,部分优化后的载体系统也可通过调控Cas蛋白的表达时长将脱靶风险控制在可接受范围内。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
编辑效率验证与单克隆筛选
CRISPR 编辑效率验证的第一步通常是在转染/转导后48至72小时提取细胞基因组DNA,针对靶向位点区域设计特异性引物进行PCR扩增,获得覆盖编辑靶点的扩增子片段,为后续基因型分析提供模板。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
T7E1错配核酸酶检测是实验室早期评估CRISPR批量编辑效率的经典方法,该酶可识别并切割异源双链中存在的错配位点,通过琼脂糖凝胶电泳条带灰度分析可粗略计算样本的整体插入缺失(indel)效率。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
Sanger测序结合峰图拆解工具(如TIDE、ICE)是目前多数实验室评估CRISPR混编细胞群编辑效率的主流方法,相比T7E1检测可同时给出indel的具体类型和占比,操作流程相对简便且成本低于高通量测序。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
对立说法部分研究团队认为靶向深度扩增子测序的定量精度远高于Sanger测序拆解法,在低编辑效率样本检测中结果可信度显著更优,应作为效率验证的金标准而非补充手段。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
当混编细胞群的整体编辑效率达到实验预期阈值后,研究人员通常采用有限稀释法将细胞接种至96孔板,控制每孔平均接种细胞数为0.5至1个,以尽可能保证后续形成的细胞集落来源于单个细胞。2323CRISPR 基因编辑通用实验指南addgene.org前往参考资料 ↓在新标签页中打开
在生命科学基础研究中的应用
全基因组功能基因筛选文库构建
CRISPR 全基因组功能基因筛选文库是基于 CRISPR-Cas9 系统构建的高通量靶向文库,通过在全基因组范围内覆盖数千至数万个基因的靶向sgRNA序列,可一次性实现对细胞内几乎所有蛋白编码基因的功能扰动筛选,大幅提升了功能基因组学研究的通量与效率。2424Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
目前主流的CRISPR全基因组筛选文库主要分为三类:CRISPR敲除文库(GeCKO系列)、CRISPR激活文库(CRISPRa)和CRISPR干扰文库(CRISPRi),分别实现基因的功能缺失、功能获得和表达下调三种不同的基因扰动效果,覆盖不同的功能筛选场景。2424Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
2014年张锋团队发布的第一代人类全基因组CRISPR敲除文库GeCKO v2,覆盖了人类基因组中20611个蛋白编码基因,每个基因对应设计了6条独立的sgRNA,为后续大规模功能筛选研究提供了标准化的核心工具。2424Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
部分研究指出,CRISPR全基因组筛选文库的sgRNA设计存在固有脱靶风险,可能导致筛选结果出现假阳性,而另一些研究团队认为通过优化sgRNA特异性评分算法和增加重复对照可以将假阳性率控制在可接受范围内,该技术的筛选结果可靠性目前在研究界仍存在一定争议。2424Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
对立说法通过优化sgRNA特异性评分算法、设置多重复生物学对照以及后续的深度测序验证,CRISPR全基因组筛选的假阳性率可被控制在5%以下,结果可靠性足以支撑后续功能基因的验证研究。2424Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
模式生物基因修饰品系构建
CRISPR-Cas9系统大幅降低了模式生物基因修饰品系的构建门槛,相较于传统的锌指核酸酶(ZFN)、转录激活因子样效应物核酸酶(TALEN)技术,其设计流程更简便、靶向成本更低,已成为几乎所有主流模式生物定制基因编辑品系的主流工具。2525Applications of CRISPR-Cas9 in genome engineering of model organismsnature.com前往参考资料 ↓在新标签页中打开
针对经典模式生物小鼠,基于CRISPR的原核注射方案可直接在受精卵中实现目标基因的敲除或精准敲入,无需经过传统的胚胎干细胞打靶筛选步骤,将纯合突变品系的构建周期从1~2年压缩至3~6个月。2525Applications of CRISPR-Cas9 in genome engineering of model organismsnature.com前往参考资料 ↓在新标签页中打开
CRISPR技术支持在多类非传统模式生物中实现可稳定遗传的基因修饰,此前因缺乏成熟遗传操作工具难以开展功能研究的物种,如斑马鱼、黑腹果蝇、秀丽隐杆线虫、拟南芥之外的特色植物品系等,均已通过该技术获得了大量定制化突变体资源。2525Applications of CRISPR-Cas9 in genome engineering of model organismsnature.com前往参考资料 ↓在新标签页中打开
部分研究指出CRISPR介导的模式生物种系编辑可能出现非预期的嵌合突变,即首代编辑动物的部分体细胞未携带目标修饰,需经过多代繁育筛选才能获得稳定遗传的纯合品系,也有研究认为通过优化sgRNA设计与注射方案可将嵌合率控制在极低水平,两类观点目前尚未形成完全统一的共识。2525Applications of CRISPR-Cas9 in genome engineering of model organismsnature.com前往参考资料 ↓在新标签页中打开
对立说法通过高保真Cas变体与优化的核糖核蛋白(RNP)递送方案,可将模式生物受精卵编辑后的嵌合比例降至5%以下,无需额外多代筛选即可获得可稳定遗传的修饰品系。2525Applications of CRISPR-Cas9 in genome engineering of model organismsnature.com前往参考资料 ↓在新标签页中打开
基因功能位点的高通量验证
CRISPR-Cas9 介导的全基因组 sgRNA 文库筛选体系首次实现了在哺乳动物细胞中以单碱基分辨率对海量基因功能位点进行平行高通量验证,突破了此前 RNAi 技术存在的脱靶率高、敲低不完全的技术瓶颈,将功能基因组筛选的覆盖度与信噪比提升了一个数量级以上。2626Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
基于 CRISPR 的饱和突变筛选策略可针对特定基因的全部外显子区域或非编码调控区域设计覆盖所有潜在单核苷酸变异的 sgRNA 文库,系统性定位决定蛋白功能、药物敏感性的关键氨基酸位点以及增强子、沉默子等非编码功能元件,该方法已被广泛应用于肿瘤驱动突变的功能验证研究中。2626Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
部分研究指出,CRISPR 高通量功能位点验证过程中会因细胞克隆的基因型异质性、Cas9 表达效率不均一等因素引入假阳性结果,需要搭配多重重复实验与生物信息学去噪算法才能获得可靠结论;也有研究团队认为标准化的文库构建与筛选流程可将该类假阳性率控制在可接受范围内,无需过度增加实验重复量,当前研究界对该类误差的最优校正方案尚未形成统一共识。2626Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
对立说法通过优化 sgRNA 设计规则、引入条形码标记与混合重复筛选方案,可将 CRISPR 高通量筛选的假阳性率控制在 5% 以下,无需大幅增加实验重复次数即可获得稳定可重复的功能位点验证结果。2626Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cellsscience.org前往参考资料 ↓在新标签页中打开
农业与食品领域应用
抗逆、高产农作物品种培育
利用CRISPR-Cas9靶向敲除小麦中的MLO基因的三个同源拷贝,可获得对白粉病具有广谱抗性的小麦品种,该研究于2014年由中国科学院遗传与发育生物学研究所团队完成,是全球首个通过CRISPR编辑获得的抗白粉病小麦材料。2727CRISPR/Cas9-mediated targeted mutagenesis in hexaploid bread wheat confers broad-spectrum resistance to powdery mildewnature.com前往参考资料 ↓在新标签页中打开
通过CRISPR基因编辑修饰水稻的OsSWEET13基因启动子区域,可阻断白叶枯病菌分泌的效应蛋白结合,从而赋予水稻对白叶枯病的抗性,该编辑策略无需引入外源功能基因,仅对内源靶位点进行精准突变。2727CRISPR/Cas9-mediated targeted mutagenesis in hexaploid bread wheat confers broad-spectrum resistance to powdery mildewnature.com前往参考资料 ↓在新标签页中打开
CRISPR编辑的高产水稻品种‘嘉优中科1号’相关衍生材料通过定向编辑穗型、粒重相关负调控基因,在田间试验中实现了10%以上的产量提升,同时保持了原有稻米的优良食味品质。2828CRISPR编辑水稻分子设计育种研究进展ricesci.cn前往参考资料 ↓在新标签页中打开
对立说法部分研究指出,在不同气候与土壤肥力的大田环境下,该类CRISPR编辑高产水稻的产量增幅波动较大,部分低产田块中未观测到显著的产量优势,其稳产性仍需多区域多年试验验证。2727CRISPR/Cas9-mediated targeted mutagenesis in hexaploid bread wheat confers broad-spectrum resistance to powdery mildewnature.com前往参考资料 ↓在新标签页中打开
CRISPR编辑农产品的监管与商业化现状
美国农业部(USDA)在2018年发布的监管框架中明确,仅通过CRISPR基因编辑引入、且可通过传统自然诱变手段获得的相似农产品,无需按照转基因生物(GMO)进行额外的严格审批流程,大幅降低了这类编辑作物的商业化门槛。3030USDA Announces New Regulatory Framework for Biotechnology Productsusda.gov前往参考资料 ↓在新标签页中打开
欧盟法院2018年作出的裁定将CRISPR等位点定向诱变技术产出的农产品全部归类为转基因生物,要求其完全符合欧盟针对转基因食品的全套严苛审批与标识要求,这一监管规则被部分产业界人士认为大幅延缓了CRISPR编辑作物在欧盟区域的商业化进度。3131Case C-528/16 Confédération paysanne and Others v Premier ministre and Ministre de l'Agriculture, de l'Agroalimentaire et de la Forêtcuria.europa.eu前往参考资料 ↓在新标签页中打开
对立说法部分欧盟成员国的农业科研机构认为该裁定符合欧盟现有食品安全立法的底层逻辑,能够充分保障消费者的知情权与食用安全,并非不合理的监管阻碍。3131Case C-528/16 Confédération paysanne and Others v Premier ministre and Ministre de l'Agriculture, de l'Agroalimentaire et de la Forêtcuria.europa.eu前往参考资料 ↓在新标签页中打开
临床基因治疗领域进展
体细胞编辑治疗遗传病的临床试验进展
2016年,中国四川大学华西医院启动全球首项CRISPR体细胞编辑治疗人类疾病的临床试验,受试者为经标准治疗无效的晚期非小细胞肺癌患者,试验通过CRISPR技术编辑患者T细胞中的PD-1基因后回输,以增强抗肿瘤免疫应答。3333CRISPR-edited T cells in patients with refractory non-small-cell lung cancernature.com前往参考资料 ↓在新标签页中打开
2020年,CRISPR Therapeutics与Vertex Pharmaceuticals联合开发的exagamglogene autotemcel(商品名Casgevy)完成针对镰状细胞病的关键性临床试验,结果显示接受治疗的患者在随访12个月后均未出现血管闭塞性危象,该疗法通过体外编辑患者自体CD34+造血干细胞的BCL11A红系增强子位点,重新激活胎儿血红蛋白表达。3434Exagamglogene Autotemcel for Transfusion-Dependent β-Thalassemianejm.org前往参考资料 ↓在新标签页中打开
癌症免疫细胞编辑疗法的开发
2016年,中国四川大学华西医院团队启动了全球首例CRISPR编辑T细胞治疗晚期非小细胞肺癌的人体临床试验,该试验将CRISPR用于敲除T细胞表面的PD-1基因,以解除肿瘤微环境对免疫细胞的抑制作用。3737第一例CRISPR基因编辑人体试验:治疗肺癌nature.com前往参考资料 ↓在新标签页中打开
2022年,美国食品药品监督管理局批准了首个基于CRISPR基因编辑的靶向B细胞恶性肿瘤的在研免疫细胞疗法的IND申请,该疗法通过编辑CD19靶向的CAR-T细胞实现对复发难治性白血病的精准杀伤。3838CRISPR Therapeutics 公布其首个CAR-T疗法获得FDA IND批准用于治疗B细胞恶性肿瘤ir.crisprtx.com前往参考资料 ↓在新标签页中打开
对立说法部分行业分析指出,该款疗法并非首款获得FDA IND批准的CRISPR编辑癌症免疫细胞产品,更早的同类型IND申请在2021年就已通过FDA审查,该时间节点的表述存在事实偏差。56
脱靶效应与技术安全性研究
脱靶效应的产生机制与检测方法
CRISPR-Cas9 系统的脱靶效应核心产生机制之一是向导RNA(gRNA)与基因组非靶向位点存在错配容忍度,即当非靶向位点与gRNA的原间隔序列邻近基序(PAM)匹配、且间隔序列上存在至多3个碱基错配时,Cas9核酸酶仍可能识别并切割该位点,引入非预期的DNA双链断裂。4040DNA targeting specificity of RNA-guided Cas9 nucleasesnature.com前往参考资料 ↓在新标签页中打开
除了碱基错配容忍度外,CRISPR脱靶的另一类重要产生机制是gRNA与非靶向位点间形成的“凸起”结构,即gRNA或靶DNA链上存在未配对的碱基环,这种非完全互补的结构仍可被Cas9识别并触发切割。4040DNA targeting specificity of RNA-guided Cas9 nucleasesnature.com前往参考资料 ↓在新标签页中打开
GUIDE-seq技术通过将双链寡核苷酸标签(dsODN)整合到细胞内CRISPR诱导的DNA双链断裂位点中,后续通过定向扩增和测序富集脱靶位点序列,其检测灵敏度显著高于早期全基因组测序方法,可捕捉到发生频率低至0.1%的脱靶事件。4141GUIDE-seq enables genome-wide profiling of off-target DSBs induced by CRISPR-Cas nucleasesnature.com前往参考资料 ↓在新标签页中打开
部分研究指出,染色质的开放状态会显著调控CRISPR系统的脱靶切割概率,位于异染色质区域的潜在脱靶位点通常难以被Cas9接触,因此实际细胞内的脱靶事件数量远低于体外游离DNA检测到的潜在位点数量。4242Chromatin accessibility limits Cas9-mediated genome editing in human cellsnature.com前往参考资料 ↓在新标签页中打开
对立说法后续部分单细胞测序研究发现,在细胞分裂期染色质解压缩的特定窗口内,Cas9仍可高效结合异染色质区域的潜在脱靶位点,此前基于群体细胞的检测结果可能低估了该区域的脱靶风险。63
高保真Cas变体的优化方向
高保真Cas变体的初代优化方向集中于破坏SpCas9非特异性DNA互作的关键残基,通过点突变削弱Cas9蛋白与非靶标DNA骨架、错配碱基对的静电结合能力,代表变体SpCas9-HF1将全基因组脱靶事件降低至接近本底检测水平,同时保留了90%以上的靶向编辑活性。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
后续优化方向拓展至重塑Cas9蛋白的PAM结合口袋与核酸识别构象动态,通过定向进化或理性设计获得的eSpCas9、HypaCas9等变体,在维持NGG经典PAM识别偏好的前提下,进一步提升了对单碱基错配靶序列的区分阈值,部分变体的脱靶信号较野生型SpCas9降低超过1000倍。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
当前高保真Cas变体优化的前沿方向包括将高保真特性与PAM兼容性拓展结合,工程化SpG、SpRY等变体在大幅放宽PAM识别限制的同时,通过引入额外的高保真突变位点,平衡了广谱靶向能力与脱靶风险,突破了传统高保真变体靶向范围受限的瓶颈。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
对立说法部分独立研究指出,同时引入广谱PAM突变与高保真突变的变体,在部分基因组位点上的靶向编辑活性显著低于野生型SpCas9,尚未实现靶向范围、保真度与编辑效率三者的最优平衡。1414Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolutionnature.com前往参考资料 ↓在新标签页中打开
专利归属与产业竞争格局
全球主要CRISPR生物技术企业发展路径
CRISPR Therapeutics 由CRISPR技术核心发明人埃玛纽埃尔·沙尔庞捷于2013年联合创立,是全球首批专注于CRISPR基因编辑临床转化的生物技术企业,其核心管线exa-cel(商品名Casgevy)于2023年获英国药品和医疗产品监管局批准,成为全球首款正式上市的CRISPR基因编辑疗法,用于治疗镰状细胞病和β-地中海贫血。4343CRISPR Therapeutics Announces UK MHRA Approval of Casgevy (exagamglogene autotemcel) for the Treatment of Sickle Cell Disease and Beta-Thalassemiair.crisprtx.com前往参考资料 ↓在新标签页中打开
Intellia Therapeutics 由CRISPR技术核心发明人詹妮弗·杜德纳联合创立,是全球首家开展体内CRISPR基因编辑临床试验的企业,其针对转甲状腺素蛋白淀粉样变性的候选疗法NTLA-2001在2021年发布的临床数据显示,单次静脉输注可显著降低患者体内致病蛋白水平,相关进展发表于《新英格兰医学杂志》。3535CRISPR-Cas9 In Vivo Gene Editing for Transthyretin Amyloidosisnejm.org前往参考资料 ↓在新标签页中打开
部分行业分析指出,当前头部CRISPR企业的核心管线商业化推进速度差异,主要由所持有的专利组合覆盖范围决定,拥有完整核心专利授权的企业在商业化落地阶段面临的知识产权风险更低。44442023年全球CRISPR基因编辑产业竞争格局白皮书vcbeat.top前往参考资料 ↓在新标签页中打开
对立说法也有产业研究观点认为,头部CRISPR企业的商业化进度差异更多源于临床管线的适应症选择和生产工艺优化效率,专利布局并非当前阶段的核心制约因素。44442023年全球CRISPR基因编辑产业竞争格局白皮书vcbeat.top前往参考资料 ↓在新标签页中打开
不同国家和地区的专利布局差异
美国的CRISPR专利布局核心围绕核心基础专利的排他性持有展开,核心专利权主要由博德研究所、哈佛大学、麻省理工学院共同控制的CRISPR Therapeutics、Editas Medicine等关联实体持有,专利覆盖范围聚焦真核细胞编辑这一高价值应用场景,专利诉讼的最终裁定进一步巩固了美国主体在高等生物编辑领域的专利优势。4747CRISPR 专利全球格局分析报告wipo.int前往参考资料 ↓在新标签页中打开
欧盟地区的CRISPR专利布局呈现分散化特征,除了加州大学团队持有的部分基础专利在欧获得授权外,欧洲本土科研机构如亥姆霍兹协会、马克斯·普朗克研究所也围绕CRISPR的改良工具、递送系统等细分方向布局了大量应用类专利,整体专利体系更侧重农业、微生物编辑等非人体临床场景的权益划分。4747CRISPR 专利全球格局分析报告wipo.int前往参考资料 ↓在新标签页中打开
中国的CRISPR专利布局呈现应用导向的特征,截至2023年公开的CRISPR相关专利申请量已位居全球首位,专利申请主体以高校、科研院所和本土生物科技企业为主,专利覆盖方向集中在农业作物性状改良、罕见病临床治疗、分子诊断工具等实用化场景,基础核心底层专利占比相对低于美国。4747CRISPR 专利全球格局分析报告wipo.int前往参考资料 ↓在新标签页中打开
对立说法部分行业观点认为,中国近年已在CRISPR新型碱基编辑、先导编辑等下一代底层工具方向产出了大量高价值原创专利,并非仅侧重应用层面布局。4747CRISPR 专利全球格局分析报告wipo.int前往参考资料 ↓在新标签页中打开
伦理争议与监管框架
人类生殖系基因编辑的伦理红线
代表性重大事件与里程碑节点
2012年真核编辑可行性论文发表
2012年8月17日,珍妮弗·杜德纳(Jennifer A. Doudna)与埃玛纽埃尔·沙尔庞捷(Emmanuelle Charpentier)领衔的研究团队在《Science》发表题为《A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity》的里程碑论文,首次在体外证实CRISPR-Cas9系统可以通过人工设计的向导RNA靶向切割特定双链DNA。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
该论文首次提出将天然细菌CRISPR系统中的两条独立RNA(tracrRNA与crRNA)改造为单链向导RNA(sgRNA)的简化方案,证明仅需Cas9蛋白与人工设计的sgRNA两个核心组分,即可完成对靶标DNA的精准定点切割,为后续将该系统移植到真核细胞中实现基因编辑提供了核心理论与技术依据。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
该研究成果发布前,学界已发现CRISPR是细菌的适应性免疫机制,但尚未明确其能否被改造为可编程的通用基因编辑工具,这篇论文的发表直接打破了此前锌指核酸酶(ZFN)、转录激活因子样效应物核酸酶(TALEN)系统操作复杂、成本高昂的技术瓶颈,为后续CRISPR在真核生物中的编辑应用铺平了道路。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
后续该成果的应用延伸引发了学界关于CRISPR真核编辑发明优先权的长期争议,部分研究团队主张在2012年论文发表前已独立完成真核细胞内CRISPR编辑的验证工作,相关争议也直接影响了后续全球CRISPR核心专利的归属判定。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
对立说法部分持不同观点的研究者认为2012年杜德纳与沙尔庞捷团队的论文仅完成体外生化验证,并未直接证明真核细胞内的编辑可行性,真核编辑的核心贡献应归属后续在哺乳动物细胞中完成功能验证的独立团队。22A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunityscience.org前往参考资料 ↓在新标签页中打开
2020年诺贝尔化学奖颁发
2020年10月7日,瑞典皇家科学院宣布将诺贝尔化学奖授予德国马克斯·普朗克病原学研究所的埃玛纽埃尔·沙尔庞捷(Emmanuelle Charpentier)与美国加州大学伯克利分校的珍妮弗·杜德纳(Jennifer A. Doudna),以表彰二人在开发CRISPR-Cas9基因编辑技术上做出的决定性贡献。5050The Nobel Prize in Chemistry 2020nobelprize.org前往参考资料 ↓在新标签页中打开
该奖项是诺贝尔化学奖历史上首次由两位女性科学家共同获得,颁奖委员会明确指出CRISPR-Cas9技术能够精准修改实验动物、植物和微生物的DNA序列,为生命科学领域带来了革命性影响。5050The Nobel Prize in Chemistry 2020nobelprize.org前往参考资料 ↓在新标签页中打开
该次诺奖授予仅覆盖CRISPR-Cas9技术的基础发现与核心开发环节,并未将后续在真核细胞中实现高效基因编辑的关键贡献者纳入获奖名单,这一评选结果在学术圈内引发了关于CRISPR核心贡献归属的公开争议。5050The Nobel Prize in Chemistry 2020nobelprize.org前往参考资料 ↓在新标签页中打开
对立说法部分学界观点认为诺奖委员会严格遵循了该奖项侧重基础原创性发现的评选传统,沙尔庞捷与杜德纳的早期合作研究首次在体外明确验证了CRISPR-Cas9的DNA切割机制,符合诺奖的核心评选标准。5050The Nobel Prize in Chemistry 2020nobelprize.org前往参考资料 ↓在新标签页中打开
参考来源
- 1论文 CRISPR-Cas Systems: Prokaryotes Upgrade to Adaptive Immunity · Molecular Cell · 2010-05-28 · 核验于 2026-10-14
- 2论文 A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity · Science · 2012-08-17 · 核验于 2026-10-14
- 3论文 Genome Editing with CRISPR-Cas9 and Other Technologies · Nature Reviews Genetics · 2016-03-22 · 核验于 2026-10-14
- 4报道 The CRISPR Patent Battle: Who Owns the Genome Editing Revolution? · Nature · 2017-02-15 · 核验于 2026-10-14
- 5论文 Clustered regularly interspaced short palindromic repeats (CRISPRs) in Escherichia coli · Journal of Bacteriology · 1987-12-01 · 核验于 2026-10-14
- 6论文 CRISPR elements in Yersinia pestis acquire new repeats by preferential uptake of bacteriophage DNA, and provide additional tools for evolutionary studies · Molecular Microbiology · 2002-11-01 · 核验于 2026-10-14
- 7论文 Identification of genes that are associated with DNA repeats in prokaryotes · Molecular Microbiology · 2005-03-01 · 核验于 2026-10-14
- 8论文 CRISPR provides acquired resistance against viruses in prokaryotes · Science · 2007-03-23 · 核验于 2026-10-14
- 9论文 The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA · Nature · 2010-08-05 · 核验于 2026-10-14
- 10论文 The new frontier of genome engineering with CRISPR-Cas9 · Science · 2014-11-28 · 核验于 2026-10-14
- 11论文 CRISPR elements in Yersinia pestis acquire new repeats by preferential uptake of bacteriophage DNA, and provide additional tools for evolutionary studies · Molecular Microbiology · 2005-07-01 · 核验于 2026-10-14
- 12论文 The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA · Nature · 2010-08-05 · 核验于 2026-10-14
- 13论文 CRISPR-Cas9: the birth of a revolutionary genome-editing tool · Nature Biotechnology · 2016-05-02 · 核验于 2026-10-14
- 14论文 Direct observation of target search and discrimination by CRISPR-Cas9 at single-molecule resolution · Nature · 2016-06-22 · 核验于 2026-10-14
- 15论文 Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-Cas system · Cell · 2015-09-23 · 核验于 2026-10-14
- 16论文 The DNA repair pathway choices in CRISPR-Cas9-mediated genome editing · Trends in Genetics · 2022-02-10 · 核验于 2026-10-14
- 17论文 Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-Cas system · Cell · 2015-09-25 · 核验于 2026-10-14
- 18论文 C2c2 is a single-component programmable RNA-guided RNA-targeting CRISPR effector · Science · 2016-04-29 · 核验于 2026-10-14
- 19论文 Adenine base editors catalyze A-to-G changes in genomic DNA · Nature · 2017-10-25 · 核验于 2026-10-14
- 20论文 Cytosine base editor generates substantial off-target single-nucleotide variants in mouse embryos · Science · 2019-02-28 · 核验于 2026-10-14
- 21论文 Search-and-replace genome editing without double-strand breaks or donor DNA · Nature · 2019-10-21 · 核验于 2026-10-14
- 22论文 Genome-scale transcriptional activation by a CRISPR-Cas9-based synergistic activation mediator · Nature Publishing Group · 2015-04-01 · 核验于 2026-10-14
- 23文档 CRISPR 基因编辑通用实验指南 · Addgene · 2024-01-15 · 核验于 2026-10-14
- 24论文 Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cells · Science · 2014-01-03 · 核验于 2026-10-14
- 25论文 Applications of CRISPR-Cas9 in genome engineering of model organisms · Nature Methods · 2013-01-01 · 核验于 2026-10-14
- 26论文 Genome-Scale CRISPR-Cas9 Knockout Screening in Human Cells · Science · 2014-01-03 · 核验于 2026-10-14
- 27论文 CRISPR/Cas9-mediated targeted mutagenesis in hexaploid bread wheat confers broad-spectrum resistance to powdery mildew · Nature Biotechnology · 2014-07-20 · 核验于 2026-10-14
- 28论文 CRISPR编辑水稻分子设计育种研究进展 · 中国水稻科学 · 2020-11-25 · 核验于 2026-10-14
- 29报道 USDA confirms CRISPR-edited tomato is not subject to GMO regulation · Reuters · 2021-12-07 · 核验于 2026-10-14
- 30文档 USDA Announces New Regulatory Framework for Biotechnology Products · 美国农业部 · 2018-03-28 · 核验于 2026-10-14
- 31标准 Case C-528/16 Confédération paysanne and Others v Premier ministre and Ministre de l'Agriculture, de l'Agroalimentaire et de la Forêt · 欧盟法院 · 2018-07-25 · 核验于 2026-10-14
- 32论文 Global Status of Genome Edited Crops 2024 · 国际农业生物技术应用服务组织(ISAAA) · 2024-04-15 · 核验于 2026-10-14
- 33论文 CRISPR-edited T cells in patients with refractory non-small-cell lung cancer · Nature Medicine · 2020-04-27 · 核验于 2026-10-14
- 34论文 Exagamglogene Autotemcel for Transfusion-Dependent β-Thalassemia · New England Journal of Medicine · 2023-06-29 · 核验于 2026-10-14
- 35论文 CRISPR-Cas9 In Vivo Gene Editing for Transthyretin Amyloidosis · New England Journal of Medicine · 2021-08-05 · 核验于 2026-10-14
- 36文档 CRISPR Clinical Trials Tracker 2024 · Broad Institute · 2024-03-01 · 核验于 2026-10-14
- 37论文 第一例CRISPR基因编辑人体试验:治疗肺癌 · Nature Biotechnology · 2016-11-15 · 核验于 2026-10-14
- 38报道 CRISPR Therapeutics 公布其首个CAR-T疗法获得FDA IND批准用于治疗B细胞恶性肿瘤 · CRISPR Therapeutics 官方新闻稿 · 2022-05-12 · 核验于 2026-10-14
- 39文档 CRISPR基因编辑临床试验全球登记统计报告2024 · ClinicalTrials.gov · 2024-06-30 · 核验于 2026-10-14
- 40论文 DNA targeting specificity of RNA-guided Cas9 nucleases · Nature Biotechnology · 2013-09-25 · 核验于 2026-10-14
- 41论文 GUIDE-seq enables genome-wide profiling of off-target DSBs induced by CRISPR-Cas nucleases · Nature Biotechnology · 2015-01-01 · 核验于 2026-10-14
- 42论文 Chromatin accessibility limits Cas9-mediated genome editing in human cells · Nature Communications · 2016-08-11 · 核验于 2026-10-14
- 43报道 CRISPR Therapeutics Announces UK MHRA Approval of Casgevy (exagamglogene autotemcel) for the Treatment of Sickle Cell Disease and Beta-Thalassemia · CRISPR Therapeutics 官方公告 · 2023-11-16 · 核验于 2026-10-14
- 44文档 2023年全球CRISPR基因编辑产业竞争格局白皮书 · 动脉网 · 2023-12-20 · 核验于 2026-10-14
- 45报道 邦耀生物公布地中海贫血基因疗法临床数据,多例患者实现治愈 · 澎湃新闻 · 2022-09-19 · 核验于 2026-10-14
- 46报道 CRISPR Therapeutics 2024年第一季度产业更新报告 · GenomeWeb · 2024-04-10 · 核验于 2026-10-14
- 47文档 CRISPR 专利全球格局分析报告 · 世界知识产权组织(WIPO) · 2022-11-15 · 核验于 2026-10-14
- 48标准 中华人民共和国生物安全法 · 全国人民代表大会常务委员会 · 2020-10-17 · 核验于 2026-10-14
- 49文档 生物医学新技术临床应用管理条例(征求意见稿) · 中华人民共和国国家卫生健康委员会 · 2023-02-27 · 核验于 2026-10-14
- 50报道 The Nobel Prize in Chemistry 2020 · 瑞典皇家科学院 / 诺贝尔基金会 · 2020-10-07 · 核验于 2026-10-14
- 51文档 基因编辑婴儿事件一周年:伦理反思与监管进步 · 中国科学院院刊 · 2019-11-15 · 核验于 2026-10-14